
『生物の変遷と進化』第18回
<2億9890万年~2億5190万年前>
(ペルム紀)
「両生類から爬虫類へ」

(爬虫類)

●ペルム紀(2億9890万年前~2億5190万年前)
ペルム紀の初期には、赤道付近に存在していたユーラメリカ大陸と、南半球から北上してきたゴンドワナ大陸が衝突し、パンゲア大陸(下図)と呼ばれる超大陸が形成されました。

そのころ、まだゴンドワナ大陸が南極地域にあり、大規模な氷床が発達していたため気候は寒冷でした。しかしゴンドワナ大陸が南極地域から北上すると、氷床は融解しはじめ気温は上昇しました。この頃、酸素濃度が30%にまで高くなりました(現在は21%)。しかし、ペルム紀の末期には火山噴火で激しい気温上昇が起こり、気温の温暖化と酸素濃度の上昇で、石炭紀から続く生物の繁栄はペルム紀の中頃まででした。
両生類から派生した爬虫類と哺乳類があらわれました。
酸素濃度が高く、天敵もまだいなかったため昆虫(トンボ)が巨大に成長しました。
節足動物も陸上で進化していきました。
植物では、シダ植物に加え、イチョウ類やソテツ類といった裸子植物も繁栄を始めた。巨大に成長し、深い森林をつくっていました。
浅い海の堆積物からは、豊富な軟体動物、棘皮動物、腕足動物の化石が多く産出します。フズリナや三葉虫など古生代を代表する生物たちが豊かに暮らしていました。
地上にも海にも様々な種類の生きものたちが溢れ、まさしく生命の楽園でした。

●爬虫類の繁栄
動物では両生類が衰退し爬虫類が繁栄しました。
爬虫類は恐竜、鳥、ワニ、トカゲ、カメ、ヘビの祖先(下図)を派生していきました。
リムノスケリス(下図)は全長1.5~3mほどで、爬虫類に似た爬虫類型両生類で動物食性だったと思われます。 まだ指に鉤爪はなく、かかとの骨が他の爬虫類型両生類と同じく癒合していました。

このころの恐竜(下図)はまだ小さく体長数cmからせいぜい3mくらいでした。
乾燥に強い皮膚と発達した四肢を備え、卵殻をもつ有羊膜卵(発生過程で羊膜を生ずる卵)を陸に産むことで陸上奥地にまで進出しました。
 初期の恐竜
●単弓類の繁栄
2億9500万~2億7200万年前 (ペルム紀前期~中期)、背中に帆を持った単弓類のディメトロドン(下図)(全長1.5~3.5m)が繁栄していました。脊の帆のようなものは体温調節説がしばしば取り上げられましたが、最近では性淘汰の産物であるとされています。ディメトロドン属そのものは哺乳類に繋がらず子孫を残すことなく絶滅しましたが、三畳紀のなかごろ(2億3000万年前)にこの仲間から哺乳類の祖先が生まれました。

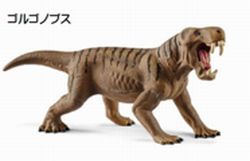
ゴルゴノプス(下図)は、ペルム紀後期の2億4800万年ほど前に南アフリカに生存していた単弓類。全長が1m前後とされ、下顎下端に達するほどの長い犬歯と発達した切歯をもっていた。当時としては極めて強力な捕食者であったが、ペルム紀末の大絶滅を生き延びることはできなかった。
●昆虫類の繁栄
石炭紀の末期からペルム紀にかけて大きな革新が生まれました。それが、「完全変態(下図)」です。それまでの昆虫は、幼虫が少しずつ成虫に近づく「不完全変態」でした。しかし、ペルム紀には「卵 → 幼虫 → 蛹 → 成虫」という成長過程をもつ昆虫が現れます。この仕組みにより、幼虫と成虫が異なる生態的ニッチ(生息空間)を使い分けられるようになり、生存率が高まりました。この進化は後々、チョウ・ハチ・ハエなどの多様な完全変態群へとつながっていきました。
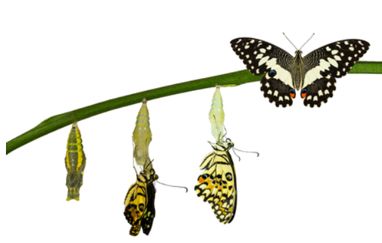 蝶の変態
ペルム紀末の火山噴火による環境変化で大気中の酸素濃度は急落しました。石炭紀に栄えた巨大昆虫は高い酸素濃度を必要としていたため、この低下で大型種は生存できず、小さな昆虫だけが残りました。
●海洋生物の繁栄
フズリナ(下図)は、ペルム紀の海で栄えた単細胞生物で、その殻が石灰岩形成にも関わりました。しかし、酸素不足と環境変化に耐えきれず、ペルム紀末に絶滅しました。絶滅のタイミングがはっきりしているため、地質年代を特定する「指標化石」として活用されています。
浅い海の堆積物からは軟体動物、棘皮動物、腕足動物の化石が豊富に産出します。
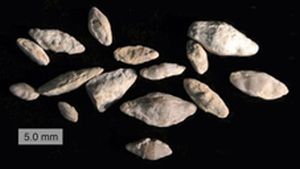 フズリナ
海底には海洋の表面からマリンスノーとなって落下した放散虫(下図)といわれるプランクトンのケイ質の殻が降り積もって、チャートというガラス質の地層が長年にわたり堆積し続けていました。
 プランクトン
●植物の繁栄
リンボクなどに代わって、マツ類、モミ類、シダ類、イチョウ類やソテツ類などの裸子植物が多くなりました。
コレダイテス(下図)は、石炭紀中期からペルム紀初期にかけて栄えた絶滅木本で、石炭中に特に多く見出されます。大形のものは高さ約30m、葉は細長くて長さ1mに達しました。

====================
次回は 第19回「ベルム紀の大陸配置図」


====================
(担当B)